乙酰辅酶A(Acetyl-CoA,简称AcCoA)是细胞能量代谢的核心中间体,参与糖、脂肪及氨基酸代谢。长期以来,人们认为它的主要功能是为能量生成、生物合成及蛋白乙酰化等反应提供底物。然而,乙酰辅酶A是否具有超越传统代谢角色的“信号功能”,一直是生物学领域的未解之谜。
最新进展:复旦大学团队揭示AcCoA全新信号机制
2025年11月12日,复旦大学上海医学院雷群英教授团队(张一凡、申晓、沈院、汪超为共同第一作者)在国际顶级期刊 Nature 发表了最新成果,论文题为:
《Cytosolic Acetyl-Coenzyme A is a signalling metabolite to control mitophagy》。
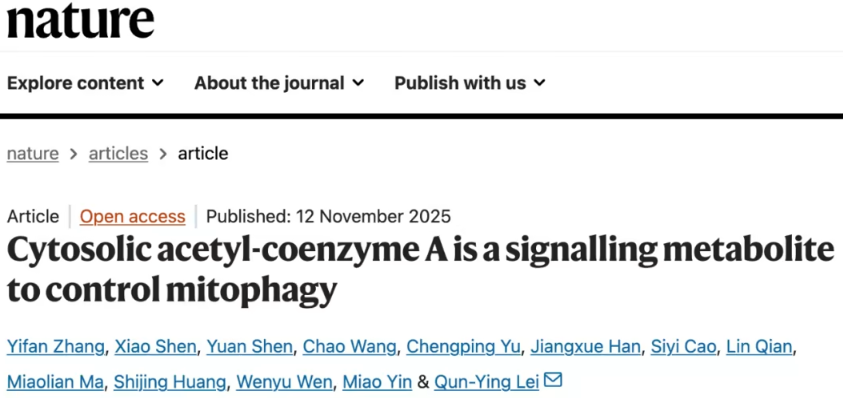
研究团队首次发现,线粒体自噬受体NLRX1能够感知细胞质中乙酰辅酶A的变化,从而在营养缺乏或代谢压力下启动线粒体自噬(mitophagy)。
这一发现揭示了乙酰辅酶A独立于乙酰化修饰与AMPK/mTOR通路之外的新型信号功能,为理解代谢物在细胞命运调控中的作用带来突破性视角。
机制探索:乙酰辅酶A通过NLRX1“开关”控制线粒体自噬
在短期禁食或饥饿条件下,细胞内葡萄糖及谷氨酰胺供应减少,导致乙酰辅酶A浓度下降。研究团队设计模拟轻度饥饿的培养条件,观察到多种细胞系中均出现线粒体自噬增强现象。
通过全基因组CRISPR筛选,他们确定了关键分子——NLRX1。该蛋白是唯一定位在线粒体的NOD样受体,能直接与自噬标志蛋白LC3结合,在维持线粒体质量方面扮演重要角色。
进一步的结构与功能分析显示:
当AcCoA水平充足时,它与NLRX1的LRR结构域结合,维持NLRX1处于抑制状态;
当AcCoA减少(如短期禁食时),结合被削弱,NLRX1解锁并寡聚化,与LC3相互作用,从而触发线粒体自噬。
动物实验证实:饥饿诱导的线粒体自噬依赖NLRX1
研究人员在小鼠实验中发现,短期饥饿后,其腓肠肌与脑组织中AcCoA水平显著下降,并伴随强烈的线粒体自噬反应。
当研究者通过外源乙酸补充提高AcCoA水平,或敲除Nlrx1基因后,这种饥饿诱导的线粒体自噬反应被显著抑制。
有趣的是,肝脏组织对这一机制不敏感,提示不同器官的代谢感应能力具有特异性。
临床启示:为抗癌耐药性提供新靶点
研究进一步揭示,KRAS抑制剂会降低细胞AcCoA水平并激活NLRX1介导的线粒体自噬。这一反应帮助肿瘤细胞清除受损线粒体,减少氧化应激,从而增强其生存能力与耐药性。
当研究者阻断NLRX1或抑制线粒体自噬后,KRAS抑制剂的抗肿瘤效果显著增强。
因此,乙酰辅酶A–NLRX1通路被认为是潜在的癌症治疗新靶点。靶向调控该通路,可能提升KRAS突变癌症对靶向药物的敏感性。
多层意义:重新定义代谢信号与细胞稳态
这一发现颠覆了传统认知,首次确立了乙酰辅酶A作为信号分子的身份,揭示其在调控线粒体质量控制中的关键作用。
它不仅深化了我们对代谢物与细胞自噬串扰机制(crosstalk)的理解,也为代谢性疾病、神经退行性疾病及癌症治疗耐药性提供了新思路。
未来,针对AcCoA–NLRX1信号轴的精准干预,可能成为调节细胞代谢与提高癌症治疗效果的重要策略。